Do nutriente ao ATP: como carboidratos, gorduras e proteínas se transformam em energia
Glicólise, ciclo de Krebs, β-oxidação, aminoácidos, ureia, corpos cetônicos e fosforilação oxidativa fazem parte de uma mesma rede metabólica regulada pelo estado energético e hormonal do organismo.
IFIS · 7 de outubro de 2026
Carboidratos, lipídios e proteínas convergem para uma rede metabólica integrada responsável pela produção de energia celular.
A célula não possui uma via exclusiva para cada nutriente trabalhando de maneira isolada.
Carboidratos, gorduras e proteínas entram em uma rede metabólica integrada, na qual moléculas provenientes de diferentes alimentos podem convergir para intermediários comuns, gerar coenzimas reduzidas e, finalmente, contribuir para a síntese de ATP.
Um dos principais pontos de convergência é a acetil-CoA.
Ela pode ser formada a partir da glicose, dos ácidos graxos e de determinados aminoácidos. A partir dela, o metabolismo pode seguir caminhos diferentes dependendo do estado energético, da disponibilidade de substratos e principalmente da regulação hormonal.
Entender essa integração é muito mais útil do que decorar cada via separadamente.
A glicose é um dos combustíveis mais versáteis do organismo
Depois de entrar na célula, a glicose pode seguir diferentes destinos.
Quando o objetivo é produzir energia, uma de suas principais rotas é a glicólise, que ocorre no citosol.
Uma molécula de glicose com seis carbonos é convertida em duas moléculas de piruvato, cada uma com três carbonos.
O saldo direto da glicólise por molécula de glicose é:
2 ATP líquidos
2 NADH
2 piruvatos
A glicólise não exige diretamente oxigênio. Entretanto, o destino dos produtos formados depende das condições metabólicas da célula.
Quando existe capacidade mitocondrial e disponibilidade adequada de oxigênio, o piruvato pode seguir para a mitocôndria e alimentar o metabolismo oxidativo.
Do piruvato à acetil-CoA
Dentro da mitocôndria, o piruvato é convertido em acetil-CoA pelo complexo piruvato-desidrogenase.
Nessa reação ocorre:
liberação de CO₂;
formação de NADH;
e produção de acetil-CoA.
Como cada glicose gera dois piruvatos, são formadas duas moléculas de acetil-CoA.
É nesse ponto que o metabolismo dos carboidratos começa a convergir com o metabolismo de gorduras e aminoácidos.
A acetil-CoA é uma das grandes “encruzilhadas” metabólicas do organismo.
PONTO-CHAVE A acetil-CoA pode ser formada a partir de diferentes combustíveis. Carboidratos → piruvato → acetil-CoA Ácidos graxos → β-oxidação → acetil-CoA Alguns aminoácidos → acetil-CoA ou intermediários relacionados O organismo não possui três sistemas energéticos independentes. As vias convergem.
O ciclo de Krebs não produz apenas ATP
Na matriz mitocondrial, a acetil-CoA formada a partir do piruvato condensa-se com o oxaloacetato, formando citrato e iniciando o ciclo de Krebs, também chamado de ciclo do ácido cítrico ou dos ácidos tricarboxílicos.
A cada acetil-CoA oxidada, uma volta do ciclo produz aproximadamente:
3 NADH
1 FADH₂
1 GTP, energeticamente equivalente a um ATP
2 CO₂
O ATP ou GTP produzido diretamente representa apenas uma pequena parte do rendimento energético.
A verdadeira importância do ciclo está na produção de NADH e FADH₂.
Essas moléculas armazenam elétrons de alta energia que serão enviados para a cadeia respiratória.
O próprio Bioquímica Básica que usamos como referência destaca que o ciclo produz apenas um GTP/ATP diretamente por acetil-CoA, enquanto grande parte da energia fica conservada nas coenzimas reduzidas que posteriormente alimentam a fosforilação oxidativa.
NADH e FADH₂ carregam energia até a cadeia respiratória
NADH e FADH₂ não são ATP.
Eles funcionam como transportadores de elétrons.
Na membrana interna da mitocôndria, seus elétrons percorrem a cadeia transportadora de elétrons.
A energia liberada nesse processo é utilizada para transportar prótons para o espaço intermembrana, criando um gradiente eletroquímico.
Quando esses prótons retornam à matriz mitocondrial através da ATP sintase, sua energia é utilizada para:
ADP + Pi → ATP
Esse processo é denominado fosforilação oxidativa.
Como aproximação bioenergética moderna:
1 NADH ≈ 2,5 ATP
1 FADH₂ ≈ 1,5 ATP
Esses valores são médias estequiométricas utilizadas para estimar o rendimento energético e não significam que cada molécula obrigatoriamente produzirá exatamente esse número em todas as condições celulares.
Então quantos ATP uma glicose realmente produz?
Somando glicólise, conversão do piruvato em acetil-CoA, ciclo de Krebs e fosforilação oxidativa, uma molécula de glicose completamente oxidada em uma célula eucariótica produz geralmente cerca de:
30 a 32 ATP
A diferença depende, entre outros fatores, da lançadeira utilizada para transferir para a mitocôndria os equivalentes redutores provenientes do NADH produzido no citosol durante a glicólise.
Por isso, os valores clássicos de 36 ou 38 ATP por glicose, ainda encontrados em alguns materiais antigos, não representam a estimativa bioenergética atualmente mais utilizada para células humanas.
NA PRÁTICA A glicólise produz apenas 2 ATP líquidos diretamente. A maior parte da energia obtida da glicose aparece depois, quando NADH e FADH₂ entregam seus elétrons à cadeia respiratória. Produzir ATP não é função exclusiva do ciclo de Krebs. Krebs produz principalmente os transportadores reduzidos que tornam possível a grande produção de ATP na fosforilação oxidativa.
Mas o organismo não espera a glicose “acabar”
Um erro comum é imaginar:
primeiro carboidrato → depois gordura → depois proteína.
O metabolismo não funciona dessa maneira.
Esses combustíveis podem ser utilizados simultaneamente.
O que muda é quanto cada um contribui em determinado estado fisiológico.
Essa escolha depende de fatores como:
alimentação;
jejum;
exercício;
estoques de glicogênio;
intensidade e duração da atividade física;
estado nutricional;
e sinalização hormonal.
Em especial, a relação entre insulina e glucagon, associada às catecolaminas em determinadas situações, ajuda a determinar se o metabolismo estará predominantemente armazenando ou mobilizando energia.
O jejum, por exemplo, reduz a sinalização de insulina e aumenta a importância de glucagon e outros hormônios contrarreguladores, coordenando glicogenólise, gliconeogênese, lipólise e oxidação de ácidos graxos.
Nas primeiras horas sem alimento, o glicogênio ajuda a manter a glicemia
O fígado armazena glicose na forma de glicogênio.
Quando a entrada de glicose pela alimentação diminui, a glicogenólise hepática ajuda a liberar glicose para a circulação.
Esse mecanismo é particularmente importante no período inicial do jejum.
Entretanto, os estoques de glicogênio são limitados.
À medida que o jejum continua, aumenta a contribuição da gliconeogênese.
Gliconeogênese: produzindo glicose sem começar pela glicose
A gliconeogênese é a formação de glicose a partir de precursores que não são carboidratos.
Entre os principais estão:
lactato;
glicerol;
alanina e outros aminoácidos glicogênicos.
O lactato pode ser convertido novamente em piruvato e participar da síntese hepática de glicose.
A alanina transportada ao fígado pode fornecer seu esqueleto de carbono para formação de piruvato.
O glicerol liberado pela quebra dos triacilgliceróis pode ser convertido em glicerol-3-fosfato e depois em di-hidroxiacetona-fosfato, DHAP, um intermediário que pode entrar na gliconeogênese.
NÃO CONFUNDA O componente da gordura que contribui diretamente para a formação de glicose é principalmente o glicerol. Não é correto dizer que os ácidos graxos de cadeia par são transformados em glicose. Eles geram principalmente acetil-CoA pela β-oxidação, e não existe produção líquida de glicose a partir desse acetil-CoA em seres humanos.
Por que acetil-CoA de ácido graxo não vira glicose?
Esse é um ponto clássico e muito importante da bioquímica.
Os ácidos graxos de cadeia par são degradados até acetil-CoA.
A acetil-CoA entra no ciclo de Krebs pela condensação com oxaloacetato.
Entretanto, os carbonos que entram como acetil-CoA são posteriormente eliminados como CO₂, enquanto o oxaloacetato necessário ao ciclo é regenerado.
Assim, não existe ganho líquido de carbono que permita converter acetil-CoA em glicose.
O livro de Marzzoco e Torres que usamos como base é explícito ao destacar que, em mamíferos, os ácidos graxos que geram acetil-CoA não podem proporcionar síntese líquida de glicose dessa maneira.
Há uma exceção parcial: ácidos graxos de cadeia ímpar podem gerar propionil-CoA, convertido em succinil-CoA, que possui potencial gliconeogênico.
Quando os aminoácidos entram na produção de energia
Proteínas não constituem um depósito energético especializado comparável ao glicogênio ou ao tecido adiposo.
Ainda assim, aminoácidos podem ser utilizados metabolicamente.
Em situações como jejum, exercício prolongado ou outras condições catabólicas, a proteólise pode disponibilizar aminoácidos para diferentes tecidos.
Mas existe uma diferença fundamental entre metabolizar um carboidrato e metabolizar um aminoácido:
o aminoácido contém nitrogênio.
Antes que seu esqueleto de carbono seja plenamente utilizado nas vias energéticas ou na gliconeogênese, seu grupo nitrogenado precisa ser adequadamente manejado.
Transaminação: movimentando o nitrogênio sem liberá-lo indiscriminadamente
Muitos aminoácidos transferem inicialmente seu grupo amino para outro composto por reações de transaminação.
O α-cetoglutarato frequentemente recebe esse grupo e se transforma em glutamato.
Assim, o nitrogênio proveniente de diferentes aminoácidos pode ser concentrado metabolicamente em algumas moléculas transportadoras, particularmente:
glutamato;
glutamina;
alanina.
Isso permite transportar nitrogênio entre tecidos de maneira metabolicamente mais segura.
Onde entra a amônia?
No fígado, parte desse nitrogênio pode ser liberada na forma de amônia/amônio durante o metabolismo dos aminoácidos.
A amônia é uma substância potencialmente tóxica, especialmente para o sistema nervoso central quando se acumula.
O organismo precisa, portanto, transformar esse nitrogênio em uma forma adequada para eliminação.
É aí que entra o ciclo da ureia.
O ciclo da ureia não produz energia: ele resolve um problema tóxico
O ciclo da ureia ocorre predominantemente no fígado e transforma nitrogênio proveniente do metabolismo dos aminoácidos em ureia.
A ureia é muito menos tóxica, circula pelo sangue e pode ser excretada principalmente pelos rins.
Um erro comum é imaginar que o ciclo da ureia seja uma “via energética nitrogenada”.
Não é.
Ele está associado ao metabolismo dos aminoácidos porque precisa lidar com o nitrogênio removido deles.
É importante lembrar que os dois átomos de nitrogênio presentes na molécula de ureia têm origens diferentes: um deles é fornecido pelo NH₄⁺, incorporado inicialmente ao carbamoil-fosfato, enquanto o outro é fornecido pelo aspartato durante o ciclo.
Na realidade, o ciclo da ureia consome energia.
Para produzir uma molécula de ureia são consumidas 3 moléculas de ATP, correspondendo a 4 ligações fosfato de alta energia.
PONTO-CHAVE Quando aminoácidos são utilizados como combustível, acontecem dois processos paralelos: Nitrogênio → manejo e eliminação → principalmente ureia Esqueleto de carbono → metabolismo energético ou gliconeogênese O ciclo da ureia resolve o problema do nitrogênio. O esqueleto carbônico é que pode alimentar outras vias metabólicas.
Para onde vai o esqueleto de carbono dos aminoácidos?
Depois de removido o nitrogênio, diferentes aminoácidos originam moléculas diferentes.
Seus esqueletos carbônicos podem gerar:
piruvato;
acetil-CoA ou acetoacetato;
α-cetoglutarato;
succinil-CoA;
fumarato;
oxaloacetato.
Ou seja, os aminoácidos podem entrar em diferentes pontos da rede metabólica.
Daí surge a classificação em:
aminoácidos glicogênicos, capazes de gerar precursores da gliconeogênese;
aminoácidos cetogênicos, capazes de gerar acetil-CoA ou acetoacetato;
e aminoácidos que apresentam ambos os comportamentos.
Alanina e glutamina conectam músculo, fígado e rim
Durante situações catabólicas, alanina e glutamina têm papel particularmente interessante.
A alanina produzida no músculo pode transportar carbono e nitrogênio até o fígado.
No fígado:
o carbono da alanina pode formar piruvato e contribuir para a gliconeogênese;
enquanto seu nitrogênio pode contribuir para a formação de ureia.
A glutamina também transporta nitrogênio entre tecidos e possui papel relevante no metabolismo renal, inclusive na formação de NH₄⁺ e na regulação do equilíbrio ácido-base.
Essa integração entre utilização dos esqueletos carbônicos e manejo do nitrogênio está descrita no material de Bioquímica que utilizamos como base.
E enquanto isso, a gordura também está sendo mobilizada
A redução da relação insulina/glucagon durante o jejum favorece a mobilização dos triacilgliceróis armazenados no tecido adiposo.
O triacilglicerol é hidrolisado, formando:
glicerol
e
ácidos graxos livres.
Os dois componentes seguem destinos diferentes.
O glicerol pode participar da gliconeogênese.
Os ácidos graxos são utilizados predominantemente como combustível oxidativo.
β-oxidação: desmontando os ácidos graxos para produzir energia
Após ativação, muitos ácidos graxos são direcionados à oxidação mitocondrial; os de cadeia longa dependem do sistema da carnitina para acessar a matriz, enquanto ácidos graxos muito longos podem iniciar sua oxidação nos peroxissomos.
A cada sequência de β-oxidação, a cadeia do ácido graxo é progressivamente encurtada e são produzidos:
acetil-CoA;
NADH;
FADH₂.
NADH e equivalentes redutores associados a flavoproteínas transferem elétrons para a cadeia respiratória por diferentes pontos de entrada.
A acetil-CoA pode entrar no ciclo de Krebs, desde que exista capacidade metabólica adequada para oxidá-la.
Essa enorme produção de equivalentes redutores ajuda a explicar o elevado rendimento energético das gorduras.
Um ácido graxo pode gerar muito mais ATP que uma glicose
Um exemplo clássico é o palmitato, um ácido graxo saturado com 16 carbonos.
Sua oxidação completa produz aproximadamente:
106 ATP líquidos
utilizando as estimativas modernas de rendimento da fosforilação oxidativa.
Isso é muito superior aos aproximadamente 30–32 ATP gerados por uma molécula de glicose.
Por isso, triacilgliceróis são excelentes moléculas para armazenamento energético de longo prazo.
Entretanto, essa comparação não significa que gordura seja “sempre melhor” que glicose.
A utilização dos substratos depende de demanda, disponibilidade de oxigênio, tecido, hormônios e situação fisiológica.
Se a β-oxidação produz tanto acetil-CoA, por que ele não entra todo no ciclo de Krebs durante o jejum?
Para entrar no ciclo de Krebs, a acetil-CoA precisa se condensar com oxaloacetato.
Durante o jejum, o fígado aumenta a gliconeogênese.
Parte do oxaloacetato e de seus precursores é direcionada para a produção de glicose.
Ao mesmo tempo:
lipólise aumenta;
β-oxidação aumenta;
produção de acetil-CoA aumenta.
Quando a quantidade de acetil-CoA produzida ultrapassa proporcionalmente a capacidade hepática de oxidá-la pelo ciclo de Krebs, esse acetil-CoA passa a ser direcionado para outra via:
a cetogênese.
Essa integração entre gliconeogênese, redução relativa da disponibilidade de oxaloacetato e formação de corpos cetônicos está descrita diretamente no livro utilizado como referência.
Corpos cetônicos não são simplesmente “restos de gordura”
No fígado, acetil-CoA proveniente principalmente da β-oxidação pode ser convertido em corpos cetônicos.
Os principais são:
acetoacetato;
β-hidroxibutirato;
acetona.
Acetoacetato e β-hidroxibutirato podem ser transportados para outros tecidos e utilizados como combustível.
Nesses tecidos, eles voltam a gerar acetil-CoA, que pode entrar no ciclo de Krebs e contribuir para produção de ATP.
Portanto, corpos cetônicos são combustíveis metabólicos, não simplesmente resíduos.
CURIOSIDADE BIOQUÍMICA O fígado é o principal produtor de corpos cetônicos durante o jejum, mas não consegue utilizá-los de maneira significativa como fonte própria de energia. Ele não possui atividade adequada da enzima necessária para uma etapa essencial da utilização periférica dos corpos cetônicos, a succinil-CoA:acetoacetato CoA transferase, frequentemente chamada de SCOT ou tiotransferase. Assim, o fígado produz e exporta os corpos cetônicos para outros tecidos.
O cérebro também consegue mudar de combustível
Em condições habituais, o cérebro depende fortemente da glicose.
Durante jejum prolongado, entretanto, ocorre adaptação metabólica.
A concentração de corpos cetônicos aumenta e o cérebro passa a utilizá-los de maneira crescente.
Isso é extremamente importante porque diminui sua necessidade absoluta de glicose.
Como consequência, cai a necessidade de produzir tanta glicose a partir de aminoácidos, ajudando a reduzir a degradação de proteínas corporais.
O material de Marzzoco e Torres descreve essa adaptação: com o prolongamento do jejum, a utilização cerebral de corpos cetônicos permite economia de glicose e redução da espoliação proteica.
Lipogênese e cetogênese predominam em situações metabólicas diferentes
Esse é outro ponto que costuma causar confusão.
Imagine muita glicose chegando após uma refeição.
A insulina aumenta.
Quando há energia suficiente e reposição dos estoques imediatos, parte do carbono excedente pode ser direcionada para:
acetil-CoA → síntese de ácidos graxos → triacilgliceróis
Para o tecido adiposo, o destino da acetil-CoA é definido principalmente pelo estado metabólico e hormonal da célula.
Queda da insulina, associada ao aumento da sinalização adrenérgica, favorece a lipólise; simultaneamente, o aumento do glucagon coordena importantes adaptações hepáticas ao jejum.
DOIS ESTADOS, DOIS DESTINOS
Estado alimentado / insulina elevada
Glicose abundante
↓
Acetil-CoA e citrato
↓
Síntese de ácidos graxos
↓
Triacilgliceróis
↓
armazenamento
Jejum / baixa relação
insulina-glucagon
Lipólise
↓
Ácidos graxos
↓
β-oxidação
↓
Acetil-CoA
↓
Corpos cetônicos
↓
combustível para
outros tecidos
Tudo converge para a necessidade de manter ATP
Apesar da complexidade das vias, existe um objetivo central:
manter energia utilizável pelas células.
Carboidratos podem produzir piruvato e acetil-CoA.
Ácidos graxos produzem acetil-CoA, NADH e FADH₂.
Aminoácidos podem gerar piruvato, acetil-CoA e intermediários do ciclo de Krebs.
O ciclo de Krebs produz grande quantidade de NADH e FADH₂.
A β-oxidação também.
Essas coenzimas entregam elétrons à cadeia respiratória.
E a energia desse fluxo eletrônico permite a síntese de ATP pela ATP sintase.
Um mapa para integrar tudo
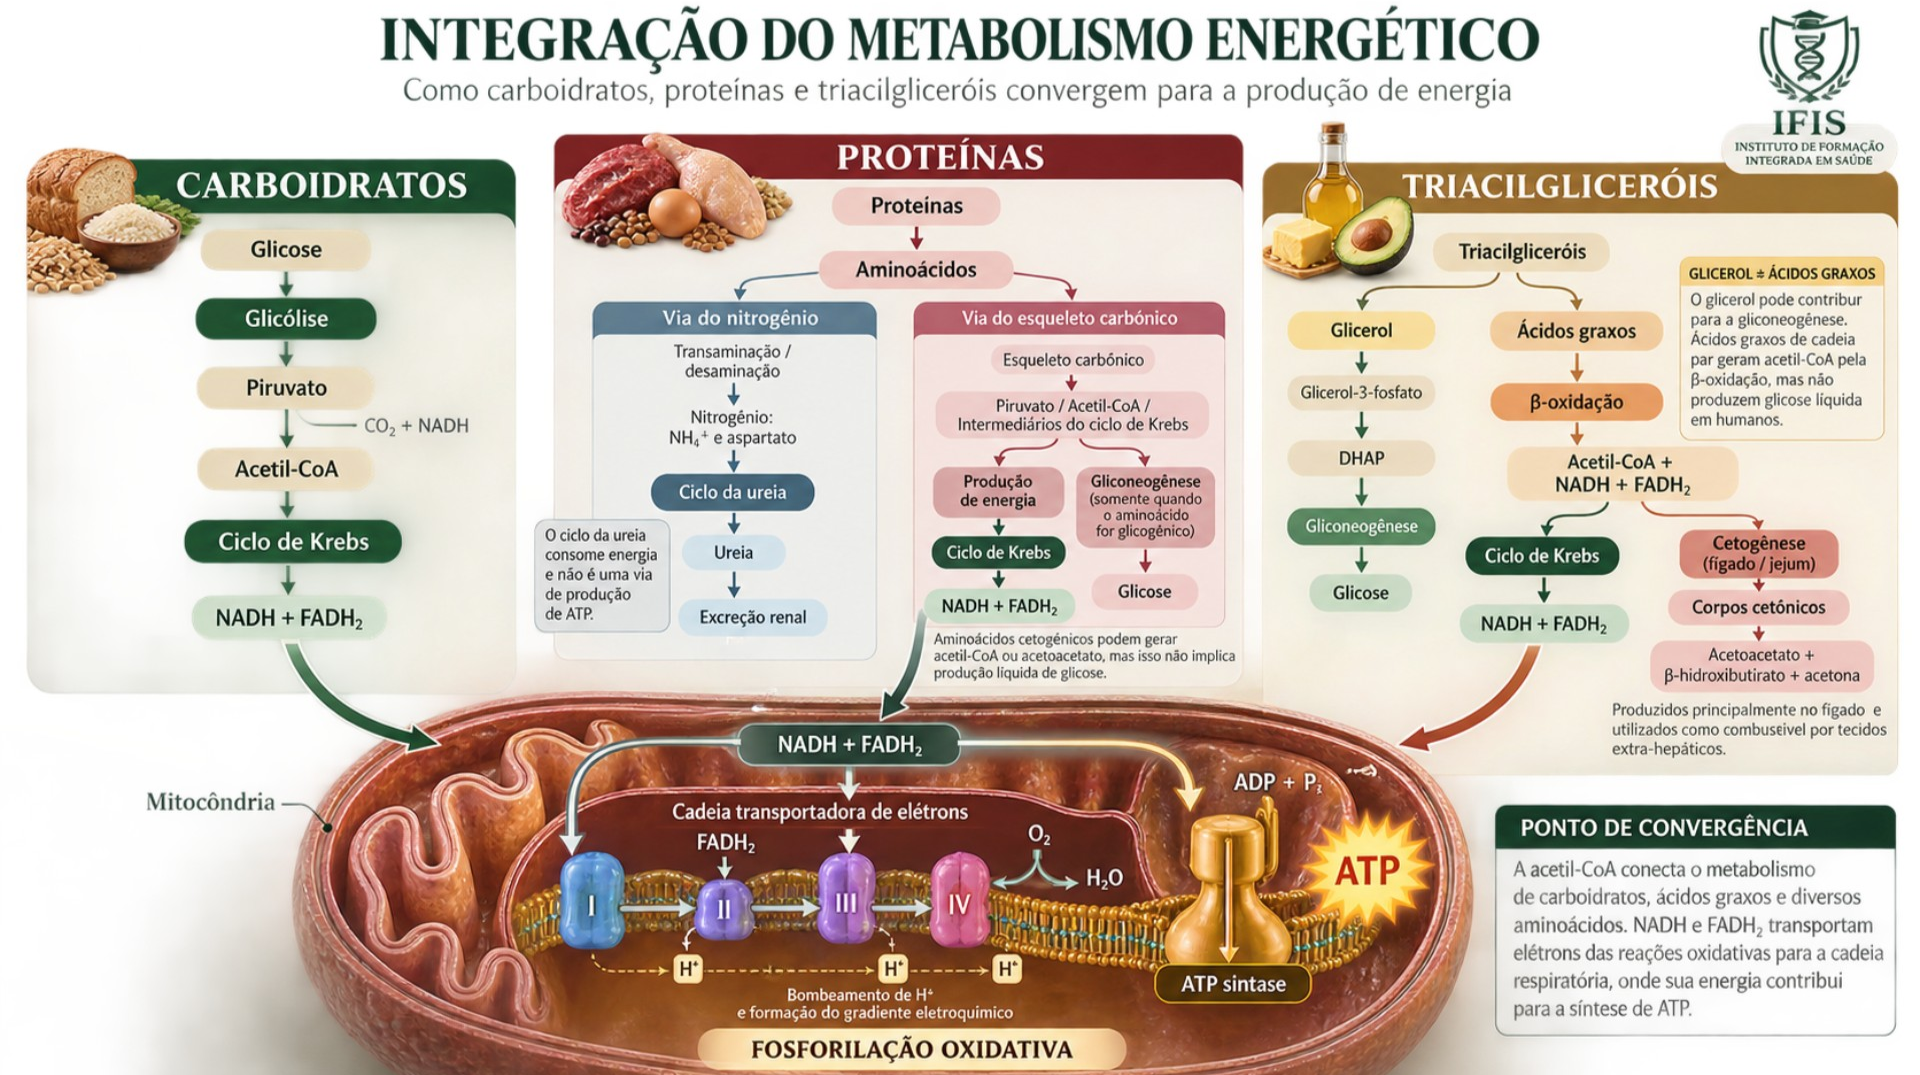
Carboidratos, proteínas e triacilgliceróis utilizam caminhos diferentes, mas suas vias se conectam por intermediários metabólicos comuns e convergem para a produção de energia.
Integração simplificada dos principais destinos energéticos de carboidratos, aminoácidos e triacilgliceróis
O esquema mostra por que não existe um “metabolismo dos carboidratos”, um “metabolismo das proteínas” e um “metabolismo das gorduras” funcionando de forma isolada. As três redes se comunicam e mudam de predominância conforme o estado energético e hormonal do organismo.
ATP não é armazenado em grande quantidade: ele é continuamente reciclado
ATP (adenosina trifosfato) funciona como uma das principais moedas energéticas da célula.
Quando uma reação utiliza sua energia:
ATP → ADP + Pi
Em outras situações ATP, ADP e AMP fazem parte de um pool dinâmico e que, no meio extracelular, ATP/ADP podem ser convertidos sucessivamente em AMP e depois em adenosina por ectonucleotidases, incluindo CD39 e CD73
Mas essas moléculas não permanecem simplesmente acumuladas.
A célula mantém um sistema dinâmico e contínuo de síntese, utilização e reciclagem dos nucleotídeos de adenina.
Durante atividade celular, ATP está sendo constantemente produzido e consumido.
Isso conecta o metabolismo energético a outra molécula extremamente interessante:
a adenosina.
Adenosina: quando metabolismo e sono se encontram
A adenosina é um nucleosídeo formado por adenina ligada à ribose.
No sistema nervoso, a adenosina extracelular atua como neuromodulador e participa da regulação do ciclo sono-vigília.
A sinalização adenosinérgica tende a aumentar com vigília prolongada em circuitos relacionados à pressão homeostática do sono, e seus efeitos são particularmente relevantes através dos receptores A₁ e A₂A. Revisões contemporâneas a descrevem como importante mediadora da regulação homeostática do sono.
A ativação desses sistemas pode:
reduzir a atividade de circuitos relacionados à vigília;
modular a liberação de neurotransmissores;
aumentar a pressão para dormir;
e favorecer a sonolência.
ATENÇÃO Não é correto concluir: “produzi muito ATP → formei muita adenosina → fiquei cansado.” A relação não é linear dessa maneira. A concentração de adenosina extracelular no cérebro depende do metabolismo celular local, da atividade neuronal e glial, da liberação e degradação de nucleotídeos e da regulação dos circuitos sono-vigília. A produção total de ATP a partir de uma refeição não determina diretamente a intensidade do sono.
E onde entra a cafeína?
Aqui aparece uma das interações mais conhecidas entre bioquímica e comportamento.
A cafeína possui estrutura que permite sua interação com os receptores de adenosina.
Ela atua como antagonista competitivo desses receptores.
Em seres humanos, a cafeína pode interagir com os quatro subtipos de receptores adenosinérgicos (A₁, A₂A, A₂B e A₃) mas seus efeitos estimulantes no sistema nervoso central, nas concentrações habitualmente alcançadas pelo consumo, estão associados principalmente ao antagonismo de A₁ e A₂A.
Ela ocupa esses receptores sem reproduzir adequadamente os efeitos da adenosina.
Como consequência, reduz temporariamente parte da sinalização associada à pressão do sono.
A cafeína não elimina a adenosina
Esse detalhe é importante.
A cafeína:
não destrói a adenosina;
não impede necessariamente que ela seja formada;
não “cria ATP”;
não remove a necessidade fisiológica de dormir.
Ela reduz temporariamente a capacidade da adenosina de sinalizar por determinados receptores.
Por isso, uma pessoa pode sentir maior estado de alerta apesar de continuar acumulando necessidade fisiológica de repouso.
Quando a concentração de cafeína diminui, a sinalização adenosinérgica deixa de estar tão bloqueada.
CURIOSIDADE: POR QUE O CAFÉ “TIRA O SONO”? Durante vigília prolongada, a sinalização da adenosina participa do aumento da pressão homeostática do sono. A cafeína antagoniza principalmente os receptores A₁ e A₂A envolvidos nesses processos. O resultado pode ser: maior estado de alerta; menor percepção de sonolência; alteração da percepção de esforço e fadiga; modulação indireta de outros sistemas neurotransmissores. Mas existe uma diferença fundamental: cafeína não cria energia. Ela modifica temporariamente a percepção e a sinalização de um dos sistemas associados à necessidade de descanso.
No final, não existem três metabolismos separados
Quando estudamos bioquímica por capítulos, é comum aprender:
glicólise em uma aula;
Krebs em outra;
β-oxidação depois;
aminoácidos mais tarde;
ureia em outro momento;
e cadeia respiratória separadamente.
Isso facilita o aprendizado inicial, mas pode esconder a característica mais importante do metabolismo:
tudo está conectado.
A acetil-CoA é compartilhada por diferentes combustíveis.
Intermediários do ciclo de Krebs conectam metabolismo energético e aminoácidos.
A gliconeogênese depende de substratos provenientes de diferentes tecidos.
A β-oxidação fornece ATP ao fígado justamente quando ele precisa gastar energia produzindo glicose.
O metabolismo do nitrogênio acompanha a utilização dos aminoácidos.
A disponibilidade de oxaloacetato influencia o destino da acetil-CoA.
E a razão insulina/glucagon ajuda a coordenar se o organismo estará predominantemente armazenando ou mobilizando combustíveis.
PONTO-CHAVE Carboidratos, gorduras e proteínas não trabalham em vias isoladas. Carboidratos podem formar acetil-CoA. Aminoácidos podem alimentar a gliconeogênese, o ciclo de Krebs ou a formação de acetil-CoA. Ácidos graxos alimentam a β-oxidação, produzindo acetil-CoA, NADH e FADH₂. O nitrogênio dos aminoácidos precisa ser manejado e pode ser eliminado como ureia. NADH e FADH₂ levam elétrons à cadeia respiratória. A fosforilação oxidativa converte grande parte dessa energia em ATP. O metabolismo não é uma sequência de vias independentes. É uma rede que muda continuamente de acordo com a necessidade do organismo.
Referências
Marzzoco A, Torres BB.Bioquímica Básica. 4ª ed. Rio de Janeiro: Guanabara Koogan; 2015. ISBN 978-85-277-2781-5.
Nelson DL, Cox MM.Lehninger Principles of Biochemistry. 7th ed. W.H. Freeman; 2017.
Hall JE.Guyton and Hall Textbook of Medical Physiology. 14th ed. Elsevier; 2021.
KARIMI, R.; CLEVEN, A.; ELBARBRY, F.; HOANG, H. The impact of fasting on major metabolic pathways of macronutrients and pharmacokinetics steps of drugs. European Journal of Drug Metabolism and Pharmacokinetics, v. 46, n. 1, p. 25–39, 2021. DOI: 10.1007/s13318-020-00656-y. PMID: 33151502.
Reichert CF, Deboer T, Landolt HP. Adenosine, caffeine, and sleep-wake regulation: state of the science and perspectives. J Sleep Res. 2022;31(4):e13597. doi:10.1111/jsr.13597. PMID: 35575450.
Jacobson KA, Gao ZG, Matricon P, Eddy MT, Carlsson J. Adenosine A2A receptor antagonists: from caffeine to selective non-xanthines. Br J Pharmacol. 2022;179(14):3496-3511. doi:10.1111/bph.15103. PMID: 32424811. Essa revisão apresenta a cafeína como antagonista não seletivo dos receptores humanos de adenosina e mostra a maior relevância funcional de A₁ e A₂A para seus efeitos centrais.
Fredholm BB, Bättig K, Holmén J, Nehlig A, Zvartau EE. Actions of caffeine in the brain with special reference to factors that contribute to its widespread use. Pharmacol Rev. 1999;51(1):83-133. PMID: 10049999.